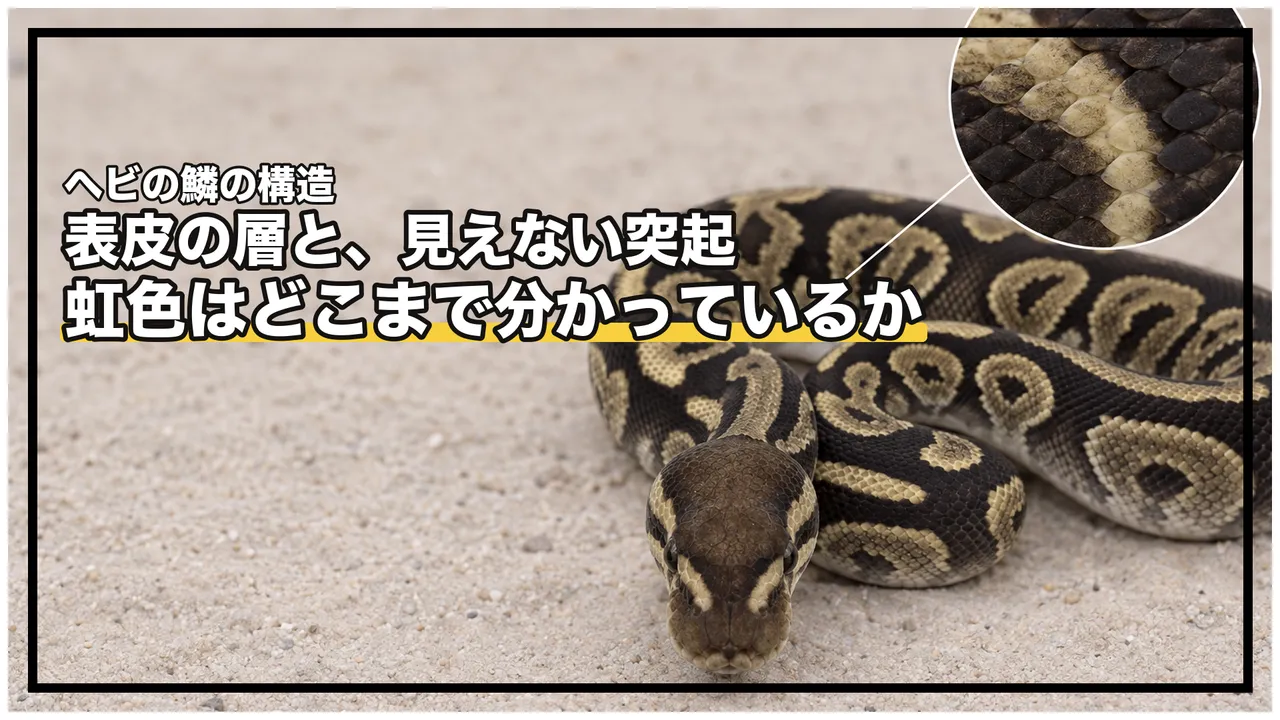
ボールパイソンを手に乗せると、鱗は爪のように硬いのに、体はしなやかに曲がります。この作りの話をします。
鱗の表面には、肉眼では見えない微細な構造があります。2026年にボールパイソンの脱皮殻で、背側の鱗の外面にある突起の寸法が測られました。それとは別に、353の種・亜種で、背側の鱗の先端部にある微細構造の形が比べられています。この2つを順に見ていきます。
いっぽう、鱗の話でよく出てくる虹色(イリデッセンス)については、ボールパイソンで測った報告を見つけられませんでした。仕組みの説明はできますが、「ボールパイソンの鱗がどう光を返すか」の数字は、この記事には書けません。
なお、ここで出てくる実験はどれも試験管や計測装置の中のもので、ケージの中で起きていることを測ったものではありません。体の構造の記事と同じく、飼育の手順を出す記事ではないとだけ先に書いておきます。
目次
脱皮で脱ぎ捨てる表皮の一式は、6つの層に分けられます
Klein & Gorb 2012(Journal of the Royal Society Interface)は、ヘビの表皮を真皮の上に重なった6つの層として整理しています。外側から順に、オーバーハウチェン・β層・メソス層・α層・ラクナ組織・クリア層。いちばん外のオーバーハウチェンが、地面や物に直接ふれる面です。この記事の後半で出てくる微細構造は、すべてこの層が作っています。
ここでいう6層は、表皮のすべてではありません。この6つの下には細胞を作る増殖層があり、皮が剥がれる前の更新期に、そこから新しい一式が下で作られます。6層は、脱皮で脱ぎ捨てられる側の一式の構成だと思ってください。
この並びには、硬さの違いがあります。いちばん外のオーバーハウチェンとβ層は硬くて曲がりにくく、その内側のα層はやわらかくてよく曲がる——構造から、長くそう考えられてきました。
同論文はそれを測っています。4種の腹側・胴の中ほどの脱皮殻を、外面の側からと内面の側からの両方で、微小な圧子を押し込んで硬さと弾性率を測る方法(ナノインデンテーション)にかけました。結果は、4種すべてで、外面の側のほうが内面の側より硬く、弾性率も高かったというものです。
ここで止めておきたいことが1つ。外面の側・内面の側のそれぞれから、押し込む深さを変えて測った結果が、「外が硬く内がやわらかい」という従来の想定を支持している——というのがこの研究の形です。6つの層それぞれの硬さを、一層ずつ測り分けたものではありません。
4種の腹側の脱皮殻では、外面の側のほうが内面の側より硬く、弾性率も高かった(増殖層と、脱皮周期にともなう新旧2世代の重なりは省いた模式図)
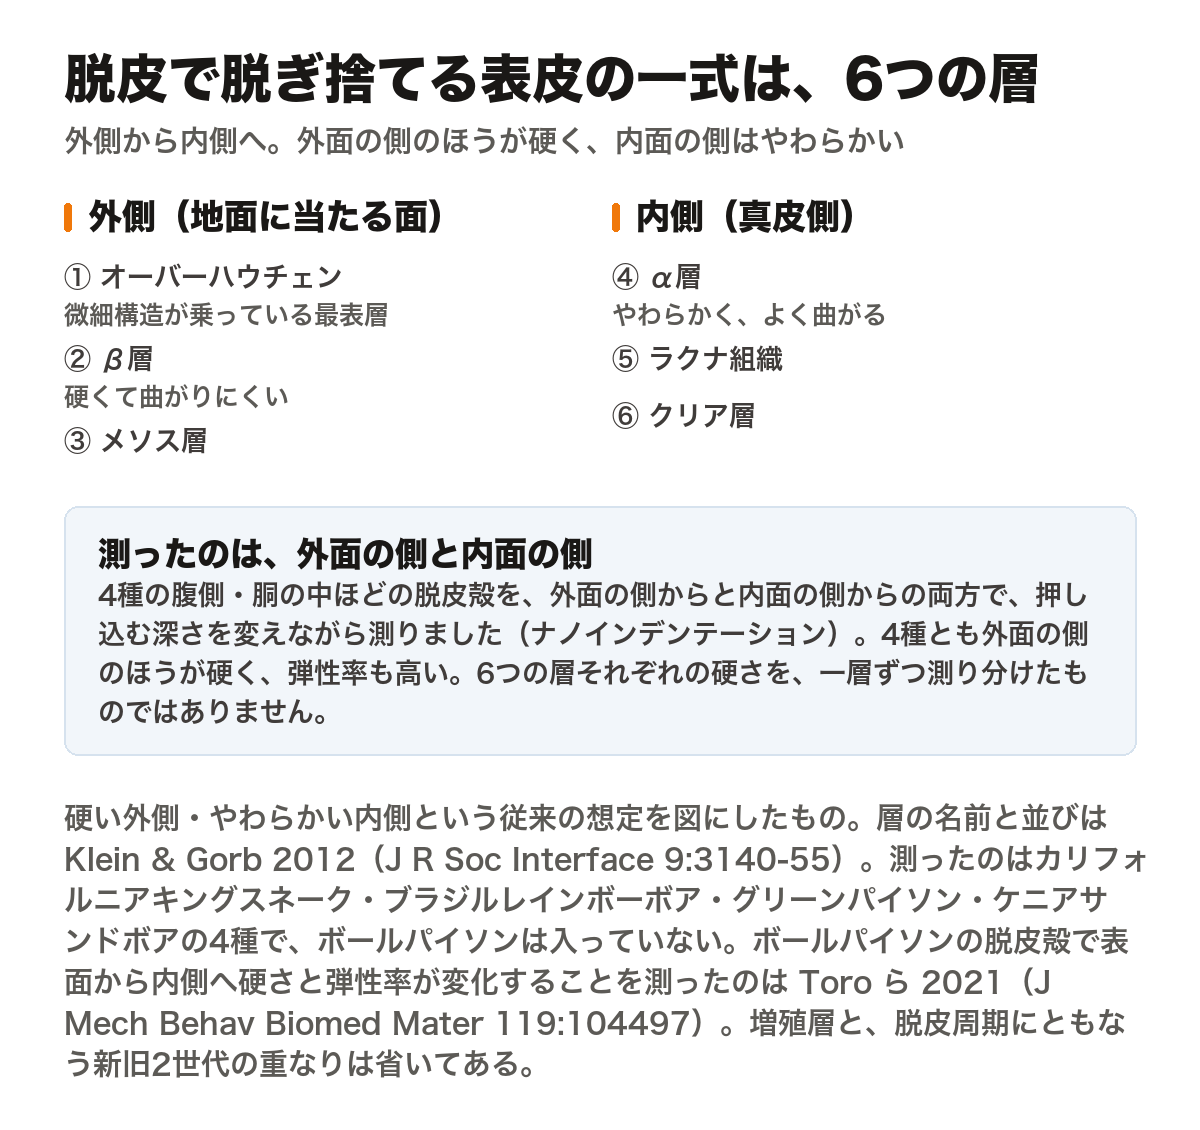
この差が何の役に立つのかについて、著者らは摩耗への抵抗を挙げています。硬い材料だけだと圧力で割れ、やわらかい材料だけだとこすれて減る。硬さが場所によって変わっていれば、応力が1点に集中しにくい——測定結果からの解釈であって、摩耗そのものを比べた実験ではありません。
この4種に、ボールパイソンは入っていません
Klein & Gorb が測ったのはカリフォルニアキングスネーク(地上性)・ブラジルレインボーボア(さまざまな環境を使う)・グリーンパイソン(樹上性)・ケニアサンドボア(砂に潜る)の4種です。
ただしボールパイソンでも、表面から内側へ硬さと弾性率が変わることは測られています。Toro ら 2021(Journal of the Mechanical Behavior of Biomedical Materials)が、ボールパイソンとボアコンストリクターの脱皮殻をナノインデンテーションで調べ、表面から内側の層へかけて硬さと弾性率が有意に変化したと報告しています。
この記事では以降も、ボールパイソンで測られたのか、他の種で測られたのかを、そのつど書き分けます。
もうひとつ、この先を読むうえで大事な前提があります。以下で紹介する微細構造の種間比較・摩擦試験・細菌の培養試験は、どれも脱皮殻を材料にしています。Klein & Gorb は、脱皮殻の表面の形が生きている個体のそれと変わらないと書いていて、後述の Arrigo らも、アフリカンハウススネーク1種で生体の皮膚生検と脱皮殻を比べ、微細構造の形が脱皮殻でも保たれることを確認したと書いています(ボールパイソンで同じことを確かめた報告は見つけられませんでした)。生きた個体を傷つけずに表面を調べられる材料として、脱皮殻はよく使われます(脱皮そのものの頻度や時間は脱皮の記事に、うまく脱げなかったときの話は脱皮不全の記事にあります)。
なお、部位によって、鱗の作りそのものが違います。いちばん極端なのが、眼球の前にある透明な膜(スペクタクル)——これもまぶたが融合してできた鱗で、胴の鱗とは別の層構成として記載されます。ボールパイソンで測った厚みと3層の中身は視力の記事にまとめてあるので、ここでは繰り返しません。
鱗の表面には、目では見えない微細構造があります
鱗の表面は、拡大していくと突起や穴の集まりになっています。以下では、ボールパイソンの脱皮殻で、背側の鱗の外面にある突起の寸法を測った研究と、353の種・亜種で、背側の鱗の先端部にある微細構造の形を比べた研究の、2本を扱います。
この2つの研究は、同じ試料で突き合わせられてはいません
前者が報告する数µmの突起と、後者が分類するオーバーハウチェン細胞の微細構造が、同じものを別の呼び方で見ているのか、別々の構造なのかは、この2本からは決まりません。同じ試料で両者の位置関係を確かめた報告を見つけられなかったので、「大きい構造の下に小さい構造がある」という階層としては書きません。
背側の鱗の外面で測った、鋭い突起の寸法
Peroutka ら 2026(ACS Omega)は、ボールパイソンの脱皮殻を走査型電子顕微鏡——細く絞った電子線を当てて、表面の細かい凹凸を立体的に写す顕微鏡——で撮り、観察した背側の鱗の外面に、鋭い突起(スパイク)が規則的に並んでいることを示しました。二次元の像の上で測られた値を並べます。
- 突起の長さ:最大で 9.0 ± 0.7 µm
- 先端から次の先端まで(following tips):4.6 ± 0.2 µm
- 隣り合う先端どうし(adjacent tips):4.4 ± 0.6 µm
後ろの2つは測る向きが違う別々の指標で、「4.4〜4.6 µm のばらつき」ではありません。
ボールパイソンの脱皮殻で、観察した背側の鱗の外面に並んでいた突起の寸法
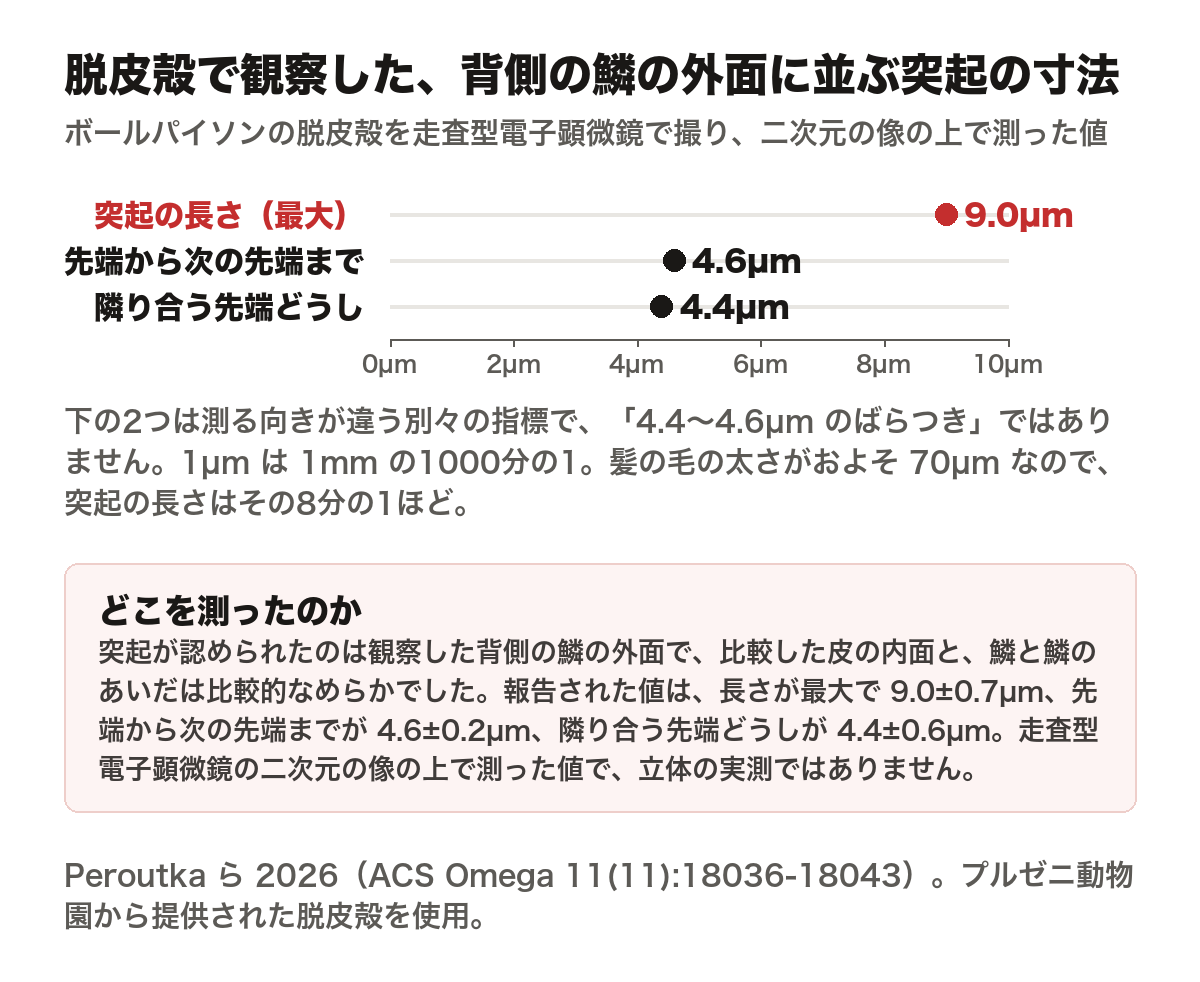
規模の感覚として、髪の毛の太さがおよそ 70µm です。突起の長さはその8分の1ほどで、肉眼では見えません。
場所による違いも書かれています。突起が認められたのは観察した背側の鱗の外面で、比較した皮の内面と鱗と鱗のあいだは比較的なめらかでした。1枚の脱皮殻の中でも、場所によって表面が違う、ということです。
著者らは、この研究の前に複数の締めつけ型(コンストリクター)のヘビの脱皮殻を予備的に見比べた上で、ボールパイソンを主要なモデルとして選んだと書いています。理由は、鱗が大きくて扱いやすかったことと、試した中で表面の微細構造がもっとも規則的で均一だったこと。「ボールパイソンだけが特別な構造を持っている」という意味ではありません。
353の種・亜種で比べた、背側の鱗の先端部の微細構造
Arrigo ら 2019(BMC Evolutionary Biology)は、最表層オーバーハウチェンの細胞が作る微細構造を、種をまたいで分類しました。
内訳は、自分たちで走査型電子顕微鏡を撮ったのが308、既報の画像から取ったのが45。合わせて353で、ここには亜種が含まれます(系統を使った解析では、重複する13亜種を除いた340種の系統樹——種どうしの近さを枝分かれで描いた図——を使っています)。当時の分類で26科のうち19科、全属の約32%(522属のうち169属)にあたります。見ているのは背側の鱗の先端部で、理由は、1枚の鱗の中でも根元から先端へ形が変わっていき、先端がもっとも種間の差が大きいからです。全データは公開されています。
ボールパイソン(Python regius)の行は、こうなっています。
- 細胞の形:wide(左右方向に幅広い。幅が長さの2倍を超える)
- 細胞の縁:mild digits(細胞の長さに対して中くらいの長さの、指状の突き出し)
- 細胞の表面:holes(穴)
- 畝(ridges):absence(無し)
- 生活型の分類:terrestrial + fossorial(地上性かつ地中性)
上の4つの形態形質は、背側の鱗の先端部についての分類です。全身の鱗や、鱗の根元、すべての成長段階に同じ分類が当てはまるとは限りません(同論文は、1枚の鱗の中での変化と、新生仔と成体での違いをどちらも報告しています)。最後の生活型だけは形態ではなく、別に記録された生態の情報です。
その最後の行について、ひとつ補足を。Arrigo らの生活型分類でも、ボールパイソンは terrestrial + fossorial に置かれています。ただしこの分類は、自分で穴を掘るかどうかを問うものではありません。当店の野生のボールパイソンの記事に書いたとおり、使っているのは齧歯類の巣穴やシロアリ塚といった、他の生きものが残した構造です。
では、この微細構造は何をしているのか。著者らは「オーバーハウチェン細胞のナノ格子の正確な機能は、完全には明らかになっていない」と書いたうえで、皮膚の自己洗浄(撥水)にかかわっている可能性が非常に高いとしています。
そのうえで、調べた4つの形態形質と生活型の分類とのあいだに有意な関連が検出されなかったことへの説明として、穴でも、指状突起でも、溝でも、どの形でもある程度の撥水性は生まれるのではないかという案を挙げています。ただし著者ら自身が、この単純な生活型の分類では捉えきれない適応があるかもしれないと断っています。そしてこの論文の結論は「対応が無かった」で終わってはいません。著者らは、形の多様さを支配しているのは、生息環境ごとの機能的な制約よりも、系統的な——そしておそらくは発生的な——制約のほうだと示唆し、細胞の縁の指状突起が祖先的な状態で、複数の系統で独立に失われたと推定しています(ボールパイソンは mild digits で、この指状突起を残している側です)。有意な関連が検出されなかったことと、関係が無いことは別です。
分類の軸が、そのまま見た目の話になるわけではありません
この4つの形質は電子顕微鏡の像を分類するための軸であって、「虹色が出るかどうか」を記録した欄ではありません。
とくに4つめの「畝(ridges)」を虹色の有無と読み替えないでください。この論文での定義は「細胞表面にできる、頭尾方向に走る、樋をひっくり返したような変形」です。虹色でよく知られるサンビームスネーク(Xenopeltis unicolor)も、このデータベースでは畝『無し』に分類されています。
脱皮殻の摩擦は、滑らせる向きで変わります
ボールパイソンの脱皮殻では、表面の構造と摩擦の関係も調べられています。
Abdel-Aal 2013(Journal of the Mechanical Behavior of Biomedical Materials)は、オスのボールパイソン5匹から得た脱皮殻の腹側から 150mm の切片を4か所(体の前半から2つ、後半から2つ)取り、体のクッションを模したシリコーンゴムの台に載せて、摩擦係数と音を同時に測るプローブを滑らせました。
結果は、滑らせる向きで摩擦係数が変わるというものです。固定した脱皮殻の上で、プローブを鱗の目に沿う向き(頭側から尾側へ)に滑らせたほうが、逆らう向き(尾側から頭側へ)より摩擦係数が小さい。論文は前者を「forward」、後者を「backward」と呼んでいます。
報告されている値は、体の前半で順目 0.256・逆目 0.281(比 1.09)、体の後半で順目 0.185・逆目 0.293(比 1.58)。体の前半より後半のほうが、向きによる差が大きいことになります。
ただしこの差は、すべての向きで出たわけではありません。前後方向と斜め方向では順目のほうが小さい一方、左右方向(体を横切る方向)では、左向きと右向きの摩擦係数がほぼ等しく、向きによる差がありませんでした。
著者はこの前後差を、表面の階層的な構造・微細な突起の前後非対称な断面・体の部位によって変わる鱗のカーブの組み合わせから説明しています。
さきほどの Toro ら 2021 も、ボールパイソンとボアコンストリクターの脱皮殻をバルサ材に押し当てる試験(乾いた条件)で、滑らせる向きによって摩擦係数が変わる異方性を報告しています。どちらの向きが小さいかまでを、この要旨から確かめることはできませんでした。
生きている個体で測ったわけではありません
Abdel-Aal 2013 の要旨には「in vivo」という語が出てきますが、これはプローブが生体でも測れる装置であることを指していて、この研究で使われたのは脱皮殻です(本文3.1節に「オスのボールパイソン5匹から得た脱皮殻」と明記されています。皮のほうを固定し、プローブを動かしています)。
そして比べているのは同じ試料に対して、滑らせる向きだけを変えたときです。相手の材料はプローブとバルサ材で、飼育で使う床材どうしを比べた研究ではありません。この実験だけで床材の適否は決められません。当店が床材を選ぶときに見ているのは、誤飲・湿度・掃除のしやすさです(床材の記事)。
48時間後の付着生菌数が、ポリスチレンより少なかった培養実験
Peroutka ら 2026 は、突起の形を記載したうえで、この突起のある面では細菌が定着しにくいのではないかという仮説も試しています。
脱皮殻から背側の鱗を切り出し、2枚を背中合わせに貼り合わせて針の先に取り付け、主に鱗の外面が細菌の懸濁液に触れるようにしました。鱗と鱗のあいだのなめらかな部分が結果に混ざるのを減らすためです。比較の相手は、同じ大きさのなめらかなポリスチレン。
37℃で48時間培養したあと、試験体から回収してコロニーを作った菌の数(CFU/cm²)を比べると、ポリスチレンより、大腸菌で 88%、黄色ブドウ球菌で 78% 少なくなっていました。
48時間後の付着生菌数:脱皮殻とポリスチレンの比較
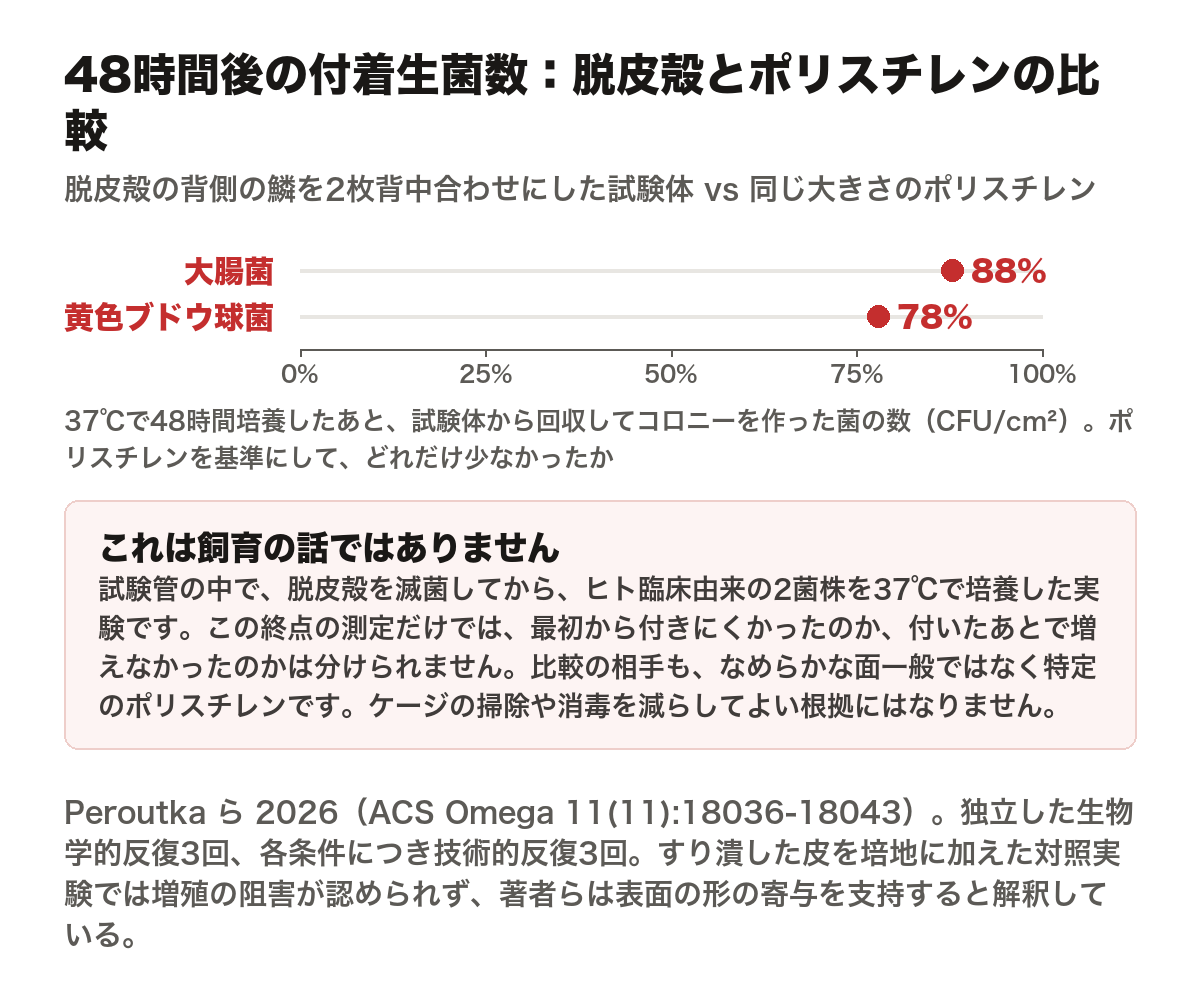
著者らは溶け出す成分の影響を、対照実験で先に調べています。滅菌した皮を液体窒素で凍らせて粉にし、培地に加えて細菌を育てたところ、増え方は普通の培地と区別がつきませんでした。この結果から、著者らは表面の形の寄与を支持すると解釈しています。
電子顕微鏡の像でも差が出ています。突起のある外面では細菌がほとんど定着していないのに対し、突起のない皮の内面と、鱗と鱗のあいだのなめらかな部分では定着していました。
この結果を、飼育の判断に持ち込まないでください
試験管の中の実験です。材料は滅菌した脱皮殻、菌は細菌学で標準的に使われる2株(大腸菌 ATCC 25922・黄色ブドウ球菌 ATCC 25923。もとはどちらも臨床分離株)、温度は37℃。どれも、ケージの中でボールパイソンが置かれている条件ではありません。
測ったのは48時間後に回収できた生菌の数なので、最初から付きにくかったのか、付いたあとで増えなかったのかは、この測り方では分けられません。比べた相手も、なめらかな面一般ではなく、特定のポリスチレン1種です。
そしてここで紹介したボールパイソンの実験は、1報に基づきます。この分野そのものが「どんな形と間隔がもっとも効くか、まだ合意が無い」段階にあることを、著者ら自身が書いています。
言えるのは「この条件では、ポリスチレンより48時間後の付着生菌数が少なかった」までで、生きた個体が皮膚の感染症にかかりにくいという意味ではありません。鱗の下が炎症を起こす潰瘍性皮膚炎(いわゆる鱗腐れ)はケージ掃除の記事に、口の中の炎症はマウスロットの記事に、どちらも現に起きるものとして書いてあります。ケージの掃除や消毒を減らす根拠にはなりません。
虹色(イリデッセンス)はどこまで分かっているか
規則的な並びの周期が、光の波長に近いとき
生き物の色には、大きく分けて2つの出どころがあります。色素が特定の波長を吸収して残りを返すものと、ナノスケールの構造と光の相互作用で生まれるもの。後者が構造色で、そのうち見る角度によって色が変わるものをイリデッセンスと呼びます(角度によってあまり変わらない構造色もあります)。
ヘビの鱗の表面で虹色を生む仕組みのひとつとされているのが、さきほどのオーバーハウチェンの微細構造です。Arrigo らは、並びが規則的で、その周期が可視光の波長に近いとき、構造由来の虹色が生じると書いています。そしてとくに規則的な例として、サンビームスネーク(Xenopeltis unicolor)とオオガシラ属の1種(Boiga multomaculata)の2種を名指ししています。
ここで、言葉を1つ分けておきます。濡れたように見える艶と、構造色は別のものです。艶は、表面がなめらかで正反射が強いだけでも出ます。ただし、見た目だけでどちらなのかを決めることはできません。分光測定の話になります。
ボールパイソンの虹色を測った報告は、見つけられませんでした
探した範囲では、ボールパイソンの鱗について、可視光の反射や角度による色の変化を測った報告が見つかりませんでした。「存在しない」ではなく「見つけられなかった」という意味です。
Arrigo らの353の種・亜種のデータも、形を分類したもので、光学特性は測っていません。著者らは論文の最後で、各組み合わせの光学特性・撥水性・摩擦特性を調べる機能解析は今後の課題だと書いています。つまり「ボールパイソンの背側の鱗の先端部にある微細構造の形」は分かっていても、「その形が光に対して何をするか」は、この論文からは出てきません。
ヘビの虹色そのものを扱った古典的な報告は、インディゴスネークについてのものです(Monroe & Monroe 1968、Science)。ボールパイソンではありません。
まとめ
どの話が、どの種で、どう測られたものかを添えて並べます。
- ヘビ4種(キングスネーク・レインボーボア・グリーンパイソン・サンドボア)の腹側・胴の中ほどの脱皮殻——脱皮で脱ぎ捨てられる側の表皮は6層に分けられ、外面の側のほうが内面の側より硬く、弾性率も高かった。外面の側・内面の側のそれぞれから押し込む深さを変えて測ったもので、6層を一層ずつ測り分けたものではない。摩耗への抵抗に役立つ可能性があるというのは、この測定からの解釈。ボールパイソンは対象に入っていない(Klein & Gorb 2012)
- ボールパイソンとボアコンストリクターの脱皮殻——表面から内側へ硬さと弾性率が有意に変化。摩擦係数は滑らせる向きで変わる(Toro ら 2021)
- オスのボールパイソン5匹の腹側の脱皮殻——摩擦係数は滑らせる向きで違い、鱗の目に沿う向き(頭側から尾側へ)に滑らせたほうが小さい(体の前半で 0.256 対 0.281、後半で 0.185 対 0.293)。ただし左右方向では向きによる差が無かった。生体での測定ではない(Abdel-Aal 2013)
- ボールパイソンの脱皮殻——観察した背側の鱗の外面に長さ最大 9.0 ± 0.7 µm の鋭い突起。先端の間隔は測る向きの違う2つの指標で、先端から次の先端まで(following tips)が 4.6 ± 0.2 µm、隣り合う先端どうし(adjacent tips)が 4.4 ± 0.6 µm。比較した皮の内面と鱗のあいだは比較的なめらか(Peroutka ら 2026)
- ボールパイソンの脱皮殻・試験管内——ポリスチレンと比べ、48時間後に回収された付着生菌数(CFU/cm²)が大腸菌 88%・黄色ブドウ球菌 78%少なかった。37℃・標準株2種(ATCC 25922 / ATCC 25923)で、ここで紹介した実験は1報に基づく。付着と増殖のどちらが効いたかは分けられない。飼育の掃除を減らす根拠にはならない(Peroutka ら 2026)
- 353の種・亜種(新規撮影308+既報45)の背側の鱗の先端部——オーバーハウチェンの微細構造を4形質で分類。ボールパイソンはwide / mild digits / holes / 畝なし。正確な機能は未解明で、撥水に関与する可能性が高い。調べた4つの形態形質と生活型の分類とのあいだには、有意な関連が検出されなかった(Arrigo ら 2019)
- 虹色——鱗の表面の微細構造の並びが規則的で、その周期が可視光の波長に近いと、構造由来の虹色が生じるという説明。とくに規則的な例として挙がっているのはサンビームスネークと Boiga multomaculata。ボールパイソンについて、可視光の反射や角度による変化を測った報告は見つけられなかった(Arrigo ら 2019 / Monroe & Monroe 1968)
この記事は、鱗について測られているものを並べただけで、飼育の手順を出したものではありません。お迎えいただいた個体の鱗で気になるところがあれば、写真を添えてお問い合わせください。
参考にした資料
査読論文
- Klein MCG & Gorb SN 2012『Epidermis architecture and material properties of the skin of four snake species』J R Soc Interface 9(76):3140-55
- Toro A ら 2021『Influence of surface morphology and internal structure on the mechanical properties and tribological response of Boa Red Tail and Python Regius snake skin』J Mech Behav Biomed Mater 119:104497
- Abdel-Aal HA 2013『On surface structure and friction regulation in reptilian limbless locomotion』J Mech Behav Biomed Mater 22:115-35
- Peroutka V ら 2026『Microarchitecture of Python regius Scale Surface: A Natural Strategy for Bacterial Adhesion Prevention』ACS Omega 11(11):18036-43
- Arrigo MI ら 2019『Phylogenetic mapping of scale nanostructure diversity in snakes』BMC Evol Biol 19(1):91
- Monroe EA & Monroe SE 1968『Origin of iridescent colors on the indigo snake』Science 159(3810):97-8
データベース
- Snake Nanostructure Database(ジュネーブ大学 LANE)——Arrigo ら 2019 で扱った353の種・亜種の形質表と、種ごとの代表的な電子顕微鏡像
当店の関連記事
